
Взаємодія екологічних чинників і фотосинтез
Зазвичай екологічні чинники, розглянуті вище, діють на рослину не ізольовано, а у єдиному комплексі. При цьому інтенсивність фотосинтезу на тлі впливу того чи іншого чинника змінюється залежно від вираженості дії інших.
Вирішальне значення для продуктивності фотосинтезу має оптимальне поєднання екологічних чинників у цьому комплексі. У ньому найбільш важливі рівень освітленості і забезпеченість рослин СO2. На другому місці – вологість і температура. Інші чинники мають підпорядковане значення. Однак це співвідношення значущості екологічних чинників для фотосинтезу не можна розглядати як догму. В умовах, наприклад, холодного літа на перше місце може висунутися температурний режим, у посуху – зволоження.
Комплекс зовнішніх екологічних чинників і внутрішній стан рослин змінюються протягом доби і за сезонами. Це призводить до закономірних добових і сезонних змін інтенсивності фотосинтезу.
Відомі два типи добового перебігу фотосинтезу. Перший тип характеризується добовою кривою фотосинтезу з двома вершинами (рис. 5.4). Перший пік фотосинтезу тут припадає на вранішні години (9-10 год. ранку), другий – на вечірні (15–16 год.).
У полуденні години має місце виразна депресія фотосинтезу, пов'язана з перегріванням листка і закриттям продихів, а також переповненням листка органічними речовинами. Полуденна депресія фотосинтезу частіше за все реєструється у рослин у стресових умовах зростання. У прохолодні й похмурі дні вона зазвичай відсутня, і тоді двовершинна крива добового ходу фотосинтезу стає плосковершинною. Уночі фотосинтез не відбувається, у цей час має місце масовий відтік органічних речовин з листків.
Другий тип характеризується одновершинною добовою кривою фотосинтезу, максимум якої припадає на полудень (рис. 5.5). Цей пік найчастіше охоплює час з 10 год. ранку до 15-16 год. після полудня. Такі одновершинні добові криві фотосинтезу в основному хара

Рис. 5.4. Добовий хід фотосинтезу в яблуні (1) і картоплі (2)

Рис. 5.5. Добовий хід фотосинтезу в люцерни
ктерні для рослин (особливо кущів і дерев) із природних місцезростань (угруповань). В усіх рослин більше половини продуктів фотосинтезу створюється у вранішні години. Цей час найбільш важливий для фотосинтезу.
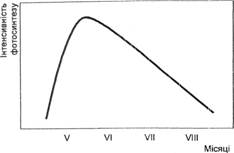
Рис. 5.6. Сезонний хід фотосинтезу в гірчиці білої
Сезонний хід фотосинтезу відрізняється значною індивідуальністю залежно від виду рослини і режиму екологічних умов протягом вегетаційного періоду. Однак, як правило, найактивніше відбувається фотосинтез у першу половину вегетаційного періоду (рис. 5.6).
Фотоперіодизм
Фотоперіодизмом називають сприйняття рослинами протягом доби відносної тривалості дня і ночі, необхідне для їх переходу у стан зрілості.
Для розуміння суті фотоперіоду слід мати на увазі, що в тропічних широтах день і ніч приблизно рівні, і дорівнюють близько 12 годин. Такий режим є короткоденним. У міру руху до полюсів – як північного, такі південного – улітку тривалість дня зростає до 14, 16, 18 годин, а за полярним колом улітку тривалість дня сягає 24 годин – сонце не заходить зовсім. Це відповідає умовам довгоденного режиму.
Відомо, що відносно фотоперіоду рослини поділяються на кілька груп:
- 1. Рослини довгого дня – починають квітувати тільки при довгому дні. В умовах короткого дня можуть давати вегетативну масу, але не квітують. І природної флори це перед усім північні види, з культурних – пшениця, шпинат, картопля.
- 2. Рослини короткого дня – для переходу до цвітіння достатні 12 годин світла в добу, а при довго му дні вони не квітують (коноплі, тютюн, хризантема й інші види рослин тропічного походження).
- 3. Рослини фотоперіодично нейтральні, цвітіння яких не залежить від тривалості дня (помідори, огірки, деякі сорти полуниці).
Дослідження показали, що у фотоперіодизмі фізіологічно значущим є саме ритм чергування дня й ночі, при чому для рослин важлива саме тривалість ночі – темного періоду доби. Вона сприймається молодим листям рослин і “транспортується” в конуси наростання і майбутні генеративні бруньки.

Рис. 5.7. Взаємоперетворення двох форм фітохрому при приєднанні або видаленні водню-відновника
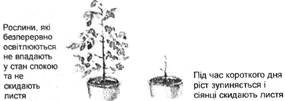
Рис. 5.8. Стан сіянців берези на довгому (ліворуч) і короткому (праворуч) дні
Безпосередньо за сприйняття фотоперіоду відповідальний фітохром – розчинний у воді хромопротеїд синюватого кольору. Він буває удвох формах – Р660 і Р730. У нормі вони мають таке співвідношення: 60% припадає на Р730 і 40% – на Р660. У темряві фітохром Р730 перетворюється на форму Р660, здатну поглинати червоні промені з довжиною хвилі 640-660 нм (рис. 5.7). Р730 є активною формою пігменту. Вона прискорює цвітіння рослин довгого дня і затримує цвітіння короткоденних. Зокрема, у короткоденних рослин Р730 накопичується на світлі й руйнується у темряві. Якщо ночі досить тривалі, то практично весь пігмент Р730 встигає зруйнуватися, і цвітіння більше не буде гальмуватися.
Фітохром бере участь у регуляції багатьох видів життєдіяльності рослин: проростанні світлочутливого насіння, розвитку гіпокотиля проростків, розгортанні сім'ядоль, диференціації епідермісу і продихів, формоутворенні тканин і органів, орієнтації хлоропластів, синтезі антоціану і хлорофілу, контролі метаболізму фітогормонів. Фітохром визначає фотоперіодичну реакцію рослин, регулює початок цвітіння, опадання листя, старіння і перехіду стан спокою.
Фотоперіодизм значною мірою визначає можливість поширення рослин, зокрема їхньої інтродукції. Прикладом можуть служити досліди з сіянцями берези (рис. 5.8). На короткому дні, властивому при- екваторіальним широтам, у берези припиняється ріст і опадають листки.
Формотвірна дія світла
Припускають, що в рецепції світла для формотвірних процесів беруть участь каротиноїди і флавіни. При цьому спрямований ріст органів зумовлюється перерозподілом гормонів росту (ауксинів), які синтезуються у апексах, тобто конусах наростання пагонів і кореня.
Фоторецептори визначають напрям росту пагонів завдяки позитивному або негативному фототропізму. Фототропізмом називають ростові вигини органів рослин під впливом одностороннього освітлення.
Пагони і корені багатьох рослин ростуть, обертаючись відповідно до положення джерела світла. У стебел фототропізм позитивний, тобто вони ростуть у бік джерела світла. Особливо яскраво це виявляється у світлолюбних видів. Корені ж зазвичай мають позитивний геотропізм та негативний фототропізм і ростуть від джерела світла (виняток становить дихальне коріння деяких тропічних рослин). А в багатьох листків, розташованих перпендикулярно до напряму світла, фототропізм поперечний.
Отже, режим освітлення переважно впливає на процес фотосинтезу і структури, які його забезпечують. Встановлено, що світло не чинить прямої дії на дихання рослин, на їхній водний режим і на мінеральне живлення. Зазначені процеси протікають як на світлі, так і в темряві. Однак побічно освітленість діє і на них. Відбувається це в основному внаслідок того, що сонячна радіація не лише поставляє енергію для фотосинтезу, але й істотно впливає на температурний режим листя. Нагрівається і ґрунті, що відбивається на вмісті в ньому води.
Сучасними дослідженнями показано, що під впливом світла, особливо короткохвильових синьо-фіолетових променів, інтенсивність звичайного темнового дихання зростає. Проте цей ефект у кількісному плані не є дуже суттєвим. Більш важливий інший побічний ефект. При фотосинтезі, який відбувається тільки на світлі, як побічний продукт виділяється кисень, і саме його накопичення у тканинах листя безпосередньо позитивно відбивається на дихальному процесі.
